
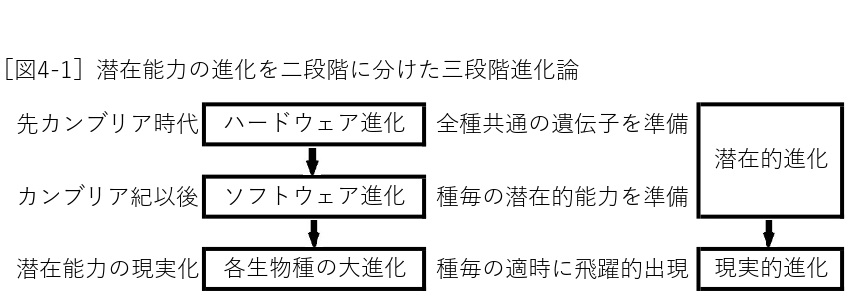
[結論となる三段階進化論の概要]
以上、ダーウィニズムの批判として最も強調して来たことは、生物の変化/進化においては、先ず当たり前すぎる大前提として「変化/進化するための潜在能力」が存在しなければならないという絶対的事実であった。ここで「変化」とは小進化のことであり、これは種の自己同一性を永遠に守るための種内変異の能力であるから進化ではない(それゆえ「小進化」という呼び方は誤りであることを第二章で詳しく説明した)。とは言え、変化(小進化)であろうと進化(大進化)であろうと、潜在能力が無ければ不可能という点は全く同じである。
ゆえに進化論は必ず「潜在能力が如何に準備されたか?」という問題から始まらなければならない。しかるにこれこそ、従来の進化論者が完全に見落としてきた根本問題なのであった。もちろん彼らも本音においては潜在能力の存在に気付いているが、それは完全に無意識のイメージとして抑圧され「生命には世の初めから進化する神秘的能力がある」という生命信仰と化し、それが建前としての自然淘汰信仰となり自然淘汰の功績泥棒を許してしまった。その過ちを悔い改め、神秘的能力と誤認していた潜在能力が中立進化によって準備された遺産であると科学的に理解すれば、生命信仰から正しい進化論に立ち戻ることができる。
この進化論の歴史的革命の嚆矢となった中立進化説は、序論で述べた①の潜在能力の準備が中立進化による分子進化で説明できることを示した。しかしながら、その潜在能力がいかにして表現型に現実化されるのかという②の問題は中立進化説だけでは解明できなかった。だからこそ、木村博士は「分子進化と表現型進化の橋渡し」を次世代の研究者に託したのである。ところが彼の死後直ちに、ミレニアム境界前後の十年あまりの間に驚異的な発見が相次いだ進化発生生物学(Evolutionary Developmental Biology、略してエボデボ)によって、その使命は実質的に果たされた。それゆえ、この成果はエボデボ革命と呼ばれている。
ここで「実質的に」と言ったのは、エボデボ革命の中心人物であるキャロルが、未だに自然淘汰信仰を離れられないという木村博士と全く同じ迷妄のゆえに、自分たちの成し遂げたことの真の意味(進化は中立進化等の完全なる偶然の結果であり、自然淘汰説は全くの幻想として否定されること)を理解できないでいるからである。しかし、先ずはともかくエボデボ革命がいかにして「分子進化と表現型進化の橋渡し」をしたのかについて見て行きたい。それは潜在能力の準備を驚くべき二段階の潜在的進化として明確に提示し、遺伝子スイッチによる現実化の最終段階と合わせて三段階進化論の具体的構築を可能にしたのである。
進化に関する人々の常識的シナリオは、生物の複雑さが増せば増すほど新しい遺伝子を発明することによって新しい機能を作ってきたというもので、そうであるなら高等な生物は原始的な生物よりも遥かに多くの遺伝子を保有しているだろうと誰もが想像したはずだ。自然淘汰で微小な進化を積み重ねたという建前のダーウィニズムでは、そのシナリオ以外に有り得ないと思われる。しかし現実は全く異なり、全高等動物の体を作る共通部品となる遺伝子が、先カンブリア時代に既に完成していたというのだ。キャロルは次のように語る。
複雑な構造をもつ大型動物の体を構築するために必要だった遺伝子の全てはカンブリア紀の大爆発でそれらが出現するよりもはるか以前にすでに用意されていた。
『シマウマの縞 蝶の模様』p.177
マウスのゲノムとヒトのゲノムを比べると、ヒトの全遺伝子の九九パーセント以上に相当する遺伝子がマウスでも見つかる。その逆もまたしかりである。ヒトの遺伝子の九六パーセントは、ヒトの染色体に並んでいるのとちょうど同じ相対的な順序で、マウスの染色体でも見つかるのだ。この類似はとても大きい。なにしろ、七五〇〇万年に及ぶ哺乳類の進化において、しかも少なくとも五五〇〇万年に及ぶ霊長類の進化において、ヒトのゲノムと齧歯類のゲノムは本質的に同じ遺伝子をほぼ同じ組成で保有しているというのだ。遺伝子の数とその組成の違いは、人類や霊長類が起源するにあたってあまり意味がなかったことになる。
『シマウマの縞 蝶の模様』p.327-8
何よりもこれが既に、自然淘汰説の明らかな否定である。自然淘汰説で考えれば、マウスに較べて、ヒトはヒトだけが獲得した高級な遺伝子を持っていなければならない。しかるに、実際にはマウスもヒトも約二万五千個のほぼ同じ遺伝子で作られている。つまり、マウスを作るための潜在能力もヒトを作るための潜在能力も、先カンブリア時代から準備されていた遺伝子セットの中に初めからあったということになるが、ならばヒトの進化に当たって、自然淘汰は一体何をしたというのか?もう少しキャロルの言葉を引用してから考えよう。
キャロルは、遺伝子の漸進的進化が否定されても、その遺伝子の「使い方の進化」は自然淘汰で説明できると言って、自然淘汰説自体は全く疑わない。遺伝子の使い方が進化したということ自体は確かであるから、それに関してキャロルが述べていることを次に紹介する。
形態進化において調節エレメントの変化が最も重要であるという議論は、目新しいものではない。実は、分子生物学の歴史の中で早くから調節遺伝子の変化に潜在的な可能性がある一方で、タンパク質の進化に比較的大きな制約のあることが認識されていた。現在、多くの経験的な証拠により明らかになったのは、新しい遺伝子の出現やタンパク質の配列が機能的に変化することよりもむしろ、形態に影響を与える遺伝子の調節が変化することのほうが、多様性の進化に非常に高い頻度で関与しているということである。
『形づくりと進化の不思議』p.167
ここで、調節エレメントや調節遺伝子と呼ばれているものが、すなわち本書で分かり易く呼んでいるところの遺伝子スイッチである。遺伝子スイッチに関しては、最近、メディアでも頻繁に取り上げられるようになってきたが、多くの場合、長寿遺伝子や肥満遺伝子のスイッチをオン/オフするという卑近な話題に限られてしまう。遺伝子スイッチの働きはもっと根源的なもので、遺伝子スイッチなしには生命の発生も維持も不可能なのである。
遺伝子は通常、DNAの二重らせん構造の奥に隠されていて機能できない。つまり、全遺伝子が基本的にスイッチオフの状態にある。そこで様々な遺伝子スイッチが、細胞の置かれた状況に応じてDNA二重らせんから遺伝子を引き出して働ける状態にするのである。心臓の細胞では心臓として働くための遺伝子だけがスイッチオンにされ、それにより心臓の細胞は自分が心臓として鼓動すべき使命を知り、命ある限り鼓動し続ける。他の細胞も全て遺伝子スイッチにより自己の使命を知って働いているのである。
胎児の発生においても、初めは全く同じであった各細胞が、体内の座標毎に働く遺伝子スイッチによって自己の置かれた位置を知り、各自のなるべき臓器になる。従って遺伝子スイッチの働き方が変われば全く別の生物が発生するようになる。大進化とは、この胎児発生プログラムの進化に他ならないと言える。で、ここで良く考えるべきことは、このプログラムつまりソフトウェアの進化において、その部品となる遺伝子(これをハードウェアと呼ぼう)の潜在能力自体は何も追加されないということである。つまり、ソフトウェアはハードウェアの隠れた性能を引き出すだけであって、その性能自体を追加することはできない。
パソコン進化の歴史を見ると、ソフトウェアが進化し過ぎてハードウェアの性能が追い付かなくなることは何度もあり、ハードとソフトは互いを追いかけて共進化するしかなかった。それを考えると、最初から必要なハードウェアを全て予測し準備した上で、それを使って全生物種のために種毎専用のソフトウェアを作るなどという手順がどれほど驚くべき文字通りの「神業」であるか、システム技術者なら必ず分かる。一方、これだけのことを発見しながら、これを「神業」と認識することもできないエボデボの学者は、ハードやソフトの存在は知っていても、システム設計の手順を知らないシステム音痴と断ずる他はない。
エボデボ革命は確かに、潜在能力の準備という問題が全遺伝子の準備と生物種毎の胎児発生プログラムの準備という驚くべき二段階で理解できることを発見した。しかし、その胎児発生プログラムが一つ一つ完成して新しい生物種が生まれる大進化が起きるまでは、そのプログラムはあくまでも表現型に現れない潜在能力に留まる。自然淘汰は表現型にしか働かないので、潜在能力は自然淘汰に掛からない。ゆえに潜在能力の進化は終始一貫中立進化であり、自然淘汰は完全否定される。これほど明確なことが、なぜ分からないのか?
これ以上のキャロル批判は無用だろう。ということで、本題の三段階進化論の結論に入る。図4-1を見て頂きたい。先ず序論で述べた①潜在能力の準備と②潜在能力の現実化の二段階を、それぞれ「潜在的進化」と「現実的進化」と呼ぶ。その潜在的進化がさらに、カンブリア紀の前と以後の二段階に明確に分かれる。そして、後者は胎児発生プログラムの進化であるから「ソフトウェア進化」と呼び、前者は部品となる遺伝子の進化であるから「ハードウェア進化」と呼ぶことにする。そしてエボデボ革命は様々な遺伝子スイッチの働きも解明したので、現実的進化も遺伝子スイッチの働きとして理解可能になったのである。
こうして「分子進化と表現型進化に橋を架ける」という木村博士の夢は見事に果たされた。そしてそれは同時に、自然淘汰説の死亡宣告であり、中立進化説の完全勝利でもあった。以下では科学編の最終的結論である三段階進化論の各段階、即ち、ハードウェア進化、ソフトウェア進化、現実的進化の具体的内容について詳しく説明していく。

コメント